文献小记:衰老相关大脑边界巨噬细胞通过迁移体介导小胶质细胞旁分泌衰老调控认知功能下降
研究背景、科学问题与科学假说
衰老是导致各种神经系统疾病的主要风险因素,其具有自我强化、逐渐加速的特征。
大脑边界巨噬细胞(border-associated macrophages, BAMs) 以高表达CD206蛋白(由Mrcl基因编码)为特征,分布于大脑血管周围间隙、脑膜等大脑边界区域,可以接触 β-淀粉样蛋白(Amyloid beta, Aβ) 等多种刺激物。既往研究提示:①β-淀粉样蛋白可引发DNA损伤,并激活神经元和非神经元细胞中的衰老相关基因通路;②BAMs功能(包括调节脑脊液的流动)随年龄增长而下降,但其在大脑衰老过程中的具体作用尚不明确。借此,可以提出本文章想要探讨的第一个科学问题:长期暴露于β-淀粉样蛋白,是否可以引起BAM细胞的基因表达发生变化,促进大脑的衰老进程?
细胞老化的传播得益于 衰老相关的分泌表型(senescence-associated secretory phenotype, SASP) ,包括多种炎症因子、趋化因子、生长因子、蛋白酶等。老化细胞所产生的细胞外囊泡也通过细胞间信号传导发挥促衰老作用。除了细胞外囊泡外,迁移体(migrasomes) 在细胞迁移时产生并从母细胞分离,也具备细胞间通讯的作用;而一些免疫细胞(如中性粒细胞和巨噬细胞等)具有强大的移动能力,其产生的迁移体在细胞通讯中发挥着至关重要的作用。脑淀粉样血管病是一种典型的与衰老相关的脑血管疾病;团队前期研究提示,巨噬细胞产生的迁移体在脑淀粉样血管病中可以导致血脑屏障受损。借此我们提出第二个科学问题:巨噬细胞,尤其是BAMs,其产生的迁移体能否通过携带和传递衰老相关信号,从而介导血脑屏障的破坏及大脑衰老的进程?
综上所述,提出初步的科学假说:大脑衰老进程中,BAMs可获得衰老相关的特性,并产生迁移体通过某种机制介导大脑的衰老进程。
研究结果
BAMs在大脑衰老早期即获得衰老相关特性
研究团队对4月龄、6月龄、10月龄的雄性,及3月龄、6月龄、12月龄的雌性野生型C57BL/6J小鼠的脑细胞单细胞RNA测序数据展开了分析,利用SenMayo gene set来评估脑细胞的衰老相关细胞特性,发现:BAMs高表达SenMayo相关基因;从6月龄开始,BAMs产生的SASP等衰老相关基因表达水平显著增加,这一现象在10月龄雄鼠和12月龄雌鼠中更明显。这提示,BAMs在小鼠青壮年阶段就开始呈现出衰老的特征,可能是衰老的“先锋队”。
采用多种标记物评估3月龄、6月龄、12月龄及18月龄小鼠大脑中BAMs的衰老情况。研究团队发现6月龄小鼠的BAMs开始出现细胞周期的停滞,且随年龄增长而愈发显著。
研究团队检测了细胞周期抑制物(编码p16的Cdkn2a基因)、细胞核膜损伤标志物(LMNB1)、警报蛋白的激活情况(HMGB1)、DNA损伤标志物(p-γH2AX)、染色质异常标志物(Cenpb的基因)、促分泌表型(p-STAT3)、代谢物变化标志物(PLIN2)、氧化损伤标志物(脂褐素)及溶酶体相关变化标志物(与衰老相关的β-半乳糖苷酶活性)。荧光原位杂交分析提示:①表达Cdkn2a基因的BAM细胞比例有所增加;②具有衰老特征的BAMs总数亦随着年龄的增加而有所增加。与之相对,神经细胞、星形胶质细胞、少突胶质细胞和小胶质细胞等其他脑细胞与衰老相关标志物的表达则在12月龄时才逐渐显现。这提示,BAMs在大脑衰老的早期就可以表现出衰老的相关特性。
类衰老状态的BAMs细胞中迁移体的数量有所增加
既然BAMs可能是脑衰老的“前锋队”,那么衰老的BAMs是否可以产生更多的迁移体?
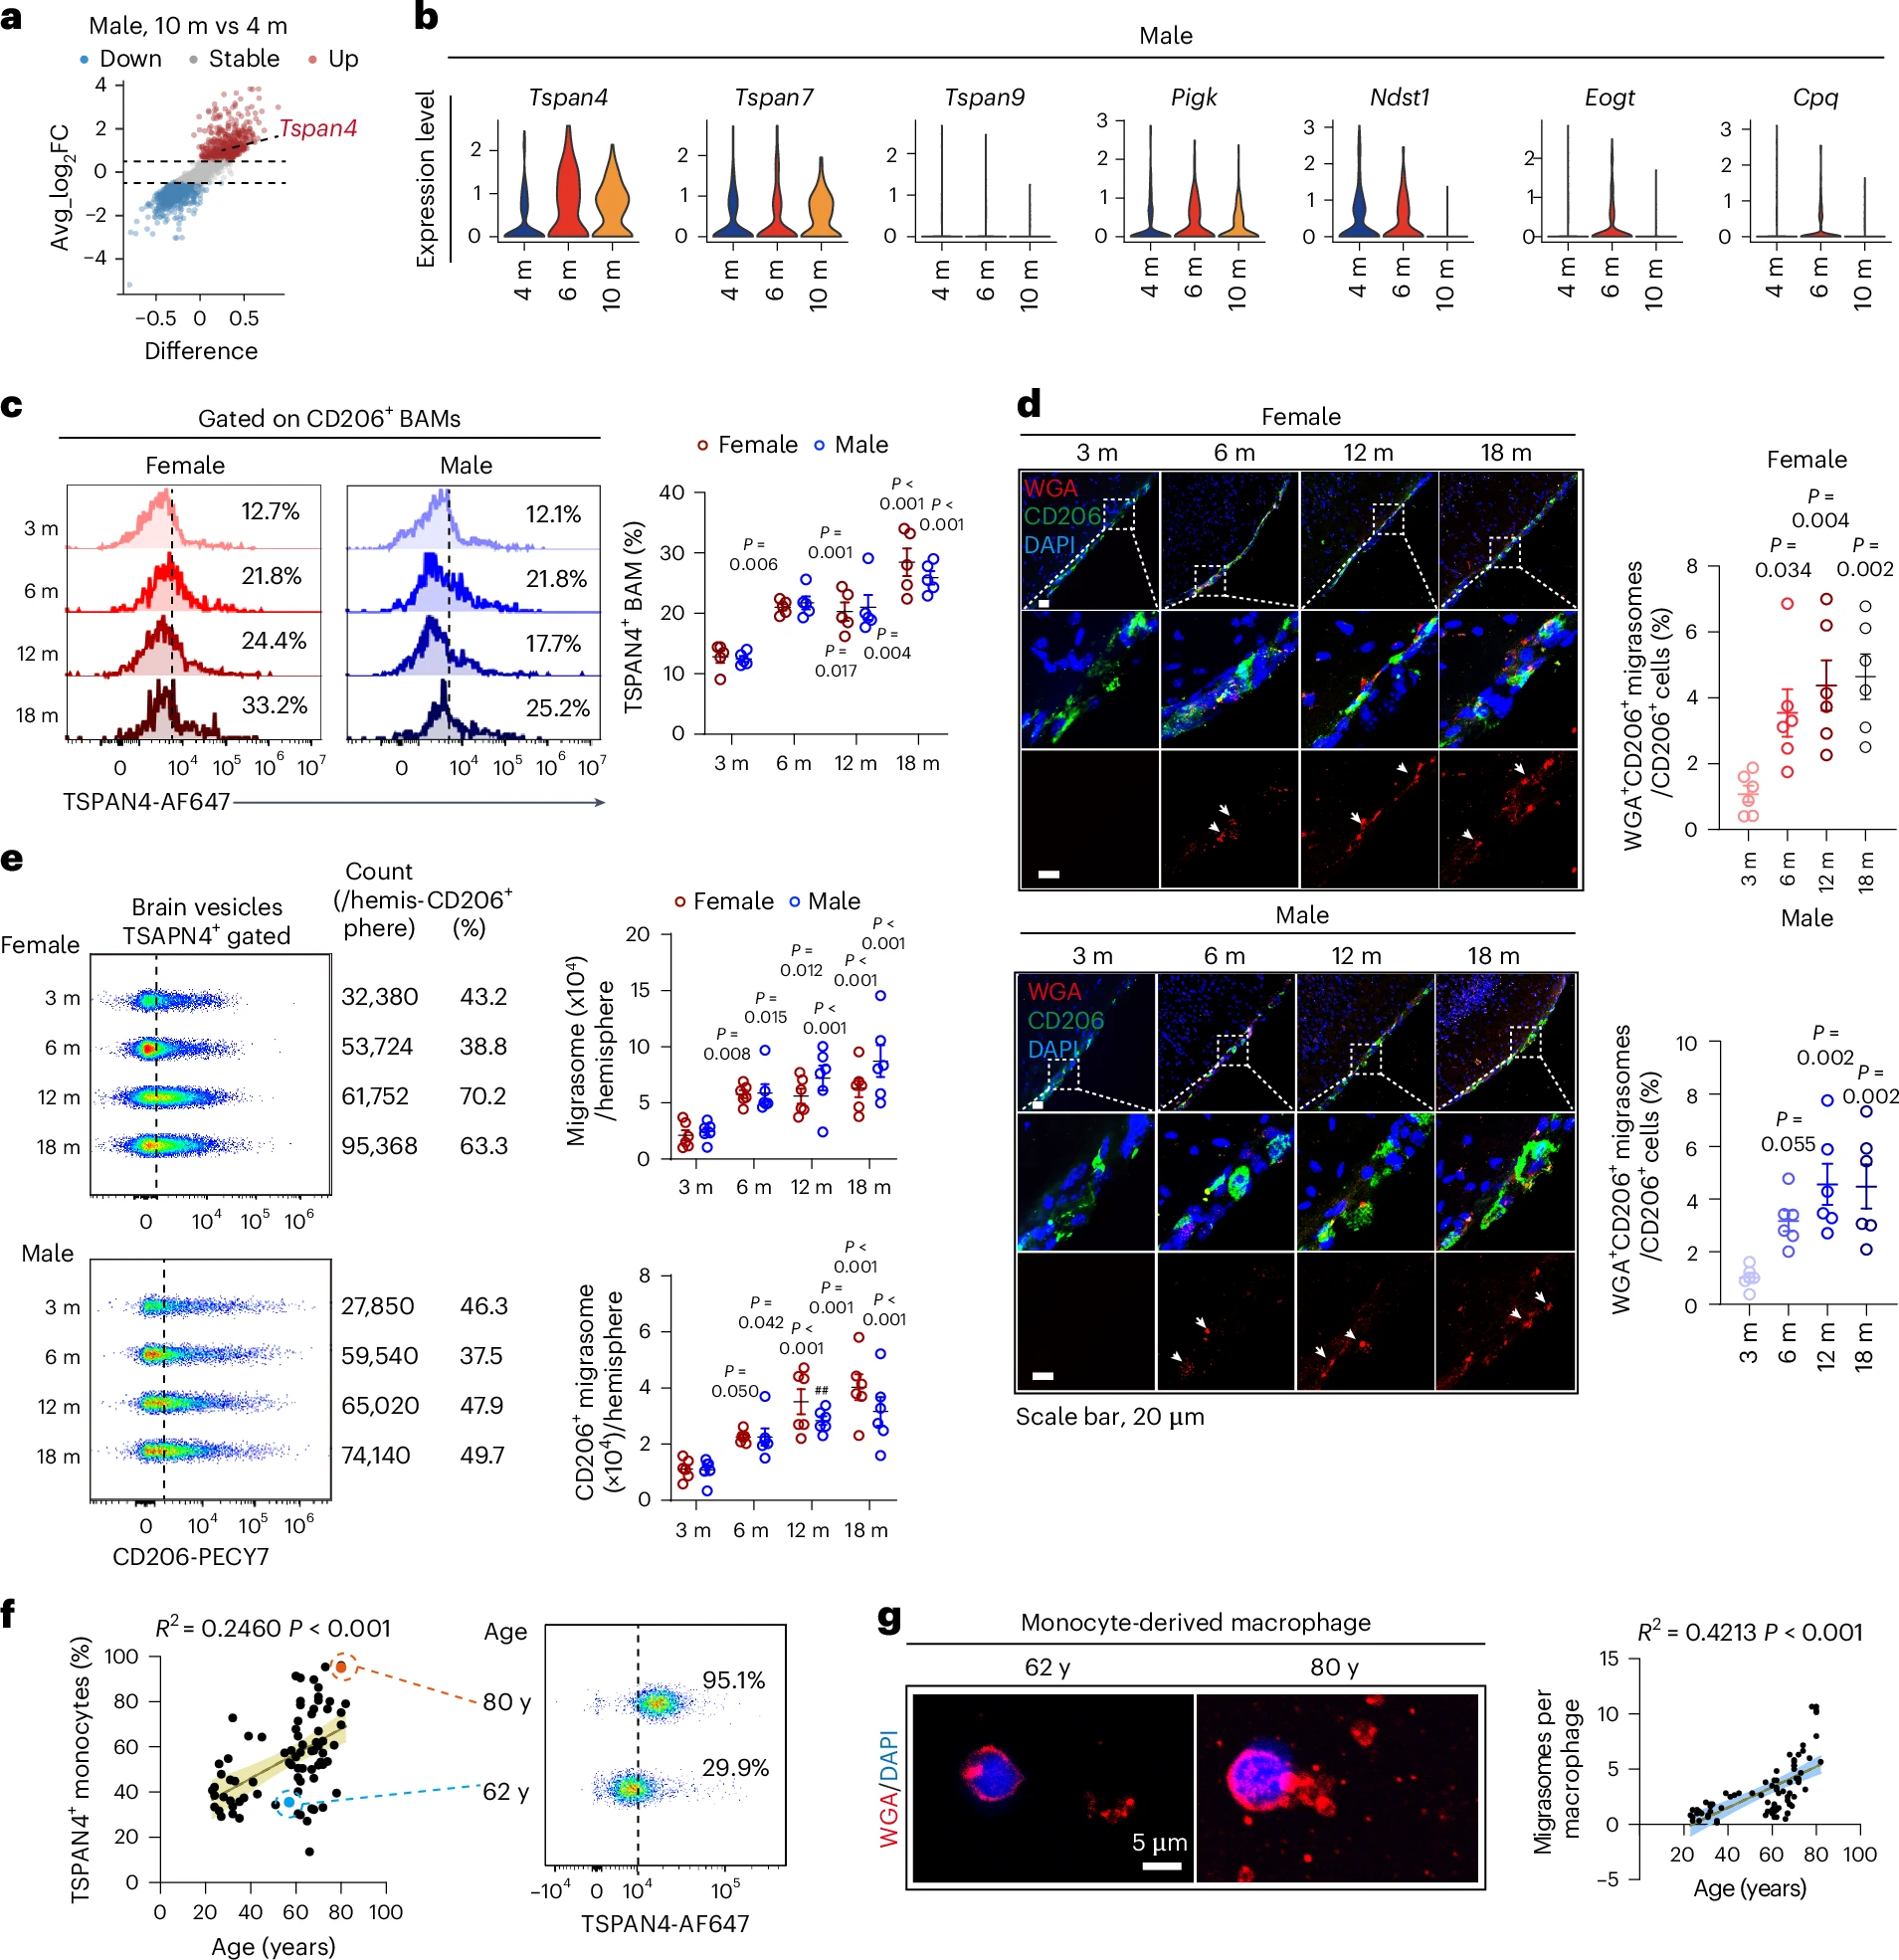
研究团队利用scRNA-seq数据分析6月龄雄性小鼠中具有衰老特征的BAMs的转录变化。结果提示:①10月龄小鼠Tspan4基因的表达水平铰4月龄显著升高(Fig.2a);②从6月龄开始,这些BAMs中多种迁移体相关基因的表达也有所增加,在10月龄时则更为明显(Fig.2b)。使用流式细胞术进行验证,确认在3/6/12/18月龄的雄性和雌性小鼠中,BAMs中的Tspan4基因的表达从6月龄开始上升,且随年龄的增长而进一步增加(Fig.2c)。
小麦胚芽凝集素(wheat germ agglutinin, WGA)可以与唾液酸和N-乙酰-D-葡萄糖胺相结合,而后者在迁移体中含量丰富。研究团队将WGA-AF555注射到3/6/12/18月龄的野生型雌性和雄性小鼠的脑内,随后取脑切片、与CD206共染。研究团队发现:自6月龄开始,WGA⁺CD206⁺迁移体的数量有所增加(Fig.2d),流式细胞术分析结果与之一致(Fig.2e)。
那么,在人身上是否也是一样的结果?为验证人类巨噬细胞系细胞中迁移体的形成,研究团队招募了80名健康志愿者。研究团队发现:血液单核细胞中的TSPAN4表达与年龄呈显著正相关(Fig.2f)。而体外实验中,把这些人的单核细胞用血清 + M-CSF诱导分化为巨噬细胞,WGA染色后计数0.5-3.0μm的囊泡,发现迁移体产生能力与年龄同样呈现正相关。
Aβ在BAMs中积累并诱导迁移体产生
类淋巴系统(glymphatic system) 是把脑内代谢废物运送至血管周围间隙再排出体外的“排污管道”,而BAMs常驻于血管周围间隙和脑膜。理论上说,BAMs可以在生理/病理状态下下接触到各种大脑的代谢废物和抗原等。其中,Aβ肽1-40(Aβ₄₀)和1-42(Aβ₄₂)、α突触蛋白(α-synuclein, α-SYN)、髓鞘碎片(myelin debris, MBP)等都经此通道清除,且这些物质与衰老密切相关。此外,Aβ₄₀和Aβ₄₂是致淀粉样变性肽/蛋白质,与脑淀粉样变性息息相关,而APOE则是这两个肽的载体。那么,这些物质能否诱导BAMs的衰老和迁移体的产生?
使用抗Aβ₄₀抗体进行免疫染色,发现Aβ₄₀以单体和寡聚体的形式(暂未形成硫磺素-S阳性的淀粉样斑块)存在于BAMs细胞中,而Aβ₄₂、α-SYN、MBP、APOE则在BAMs中无显著存在(Fig.3a),而流式细胞术的结果与此相符(Fig.3b)。这提示了Aβ₄₀与BAMs衰老、迁移体产生的强相关性。Aβ是强效促衰老因子,而既往研究发现Aβ₄₀可以诱导BAMs产生迁移体。那么是否可以推测:长期暴露于Aβ可以诱导BAMs衰老,进而导致迁移体的释放?
研究团队进一步将经过荧光标记的Aβ₄₀-TAMRA通过大脑池注入3月龄野生型雄性小鼠的脑脊液中。在第1、3、5、7天后检测发现:Aβ富集于BAMs中,且在含有Aβ₄₀-TAMRA的BAMs中,TSPAN4的表达水平显著增高(Fig.3c)。而在5xFAD转基因小鼠中,大脑会产生大量的Aβ,因此在4月龄时Aβ₄₀便已富集至BAMs中。与前一致,5xFAD小鼠的BAMs也高表达TSPAN4表达水平。这提示Aβ的确可以诱导BAMs的TSPAN4表达上调,与BAMs的衰老增多存在关联。
体外实验中, 从小鼠骨髓提取的巨噬细胞(mouse bone marrow macrophages, BMDMs) ,经Aβ刺激后亦表现出相应反应:处理1天后,巨噬细胞的细胞周期明显受抑制;从第3天开始,巨噬细胞的细胞体和细胞核大小有所增加;并出现SA-β-Gal积累、端粒缩短、细胞衰老相关标志物表达上调、SASP水平增多、细胞周期抑制因子表达、核膜破坏、警报蛋白激活、DNA损伤、染色质异常、促分泌表型出现、代谢物改变、氧化损伤等衰老相关的表现。野生型RAW264.7巨噬细胞也出现了端粒缩短、核膜破坏、警报蛋白激活、代谢物改变等变化。这进一步提示了Aβ₄₀刺激后的BMDMs可出现衰老表现。此外,将经过Aβ处理6小时到10天的BMDMs和未经处理的 野生器官型脑切片(organotypic brain slices, OSCs) 共培养,OSCs的脑细胞的细胞周期出现了显著停滞,提示衰老的BMDMs可通过某种机制将衰老啊信号传给了旁边的健康脑组织。
Aβ处理后的人类血液单核细胞衍生出的巨噬细胞始终表现出以下特征:核膜损伤(LMNB1)、警报蛋白(HMGB1)的活化、DNA损伤标志物(p-γH2AX)的表达、促分泌表型(p-STAT3)的出现,溶酶体功能的改变(SA-β-Gal)、细胞周期的停滞以及端粒缩短(Fig.3f-h)。Aβ₄₀的刺激也诱导巨噬细胞产生了大量的迁移体(Fig.3i)。上述结果进一步证实,Aβ₄₀刺激可使BAMs表现出衰老相关特性,进而导致迁移体的产生。

类衰老状态巨噬细胞所产生的迁移体可诱导细胞进一步衰老
前述研究发现Aβ₄₀可诱导BAMs衰老并产生更多迁移体,后者可能通过某种机制将衰老信号传递给健康的脑细胞。那么这种机制是什么?是衰老BAMs所产生的迁移体中特殊的物质组成吗?抑或是迁移体本身的特性使之更容易扩散到脑中的各个地方?
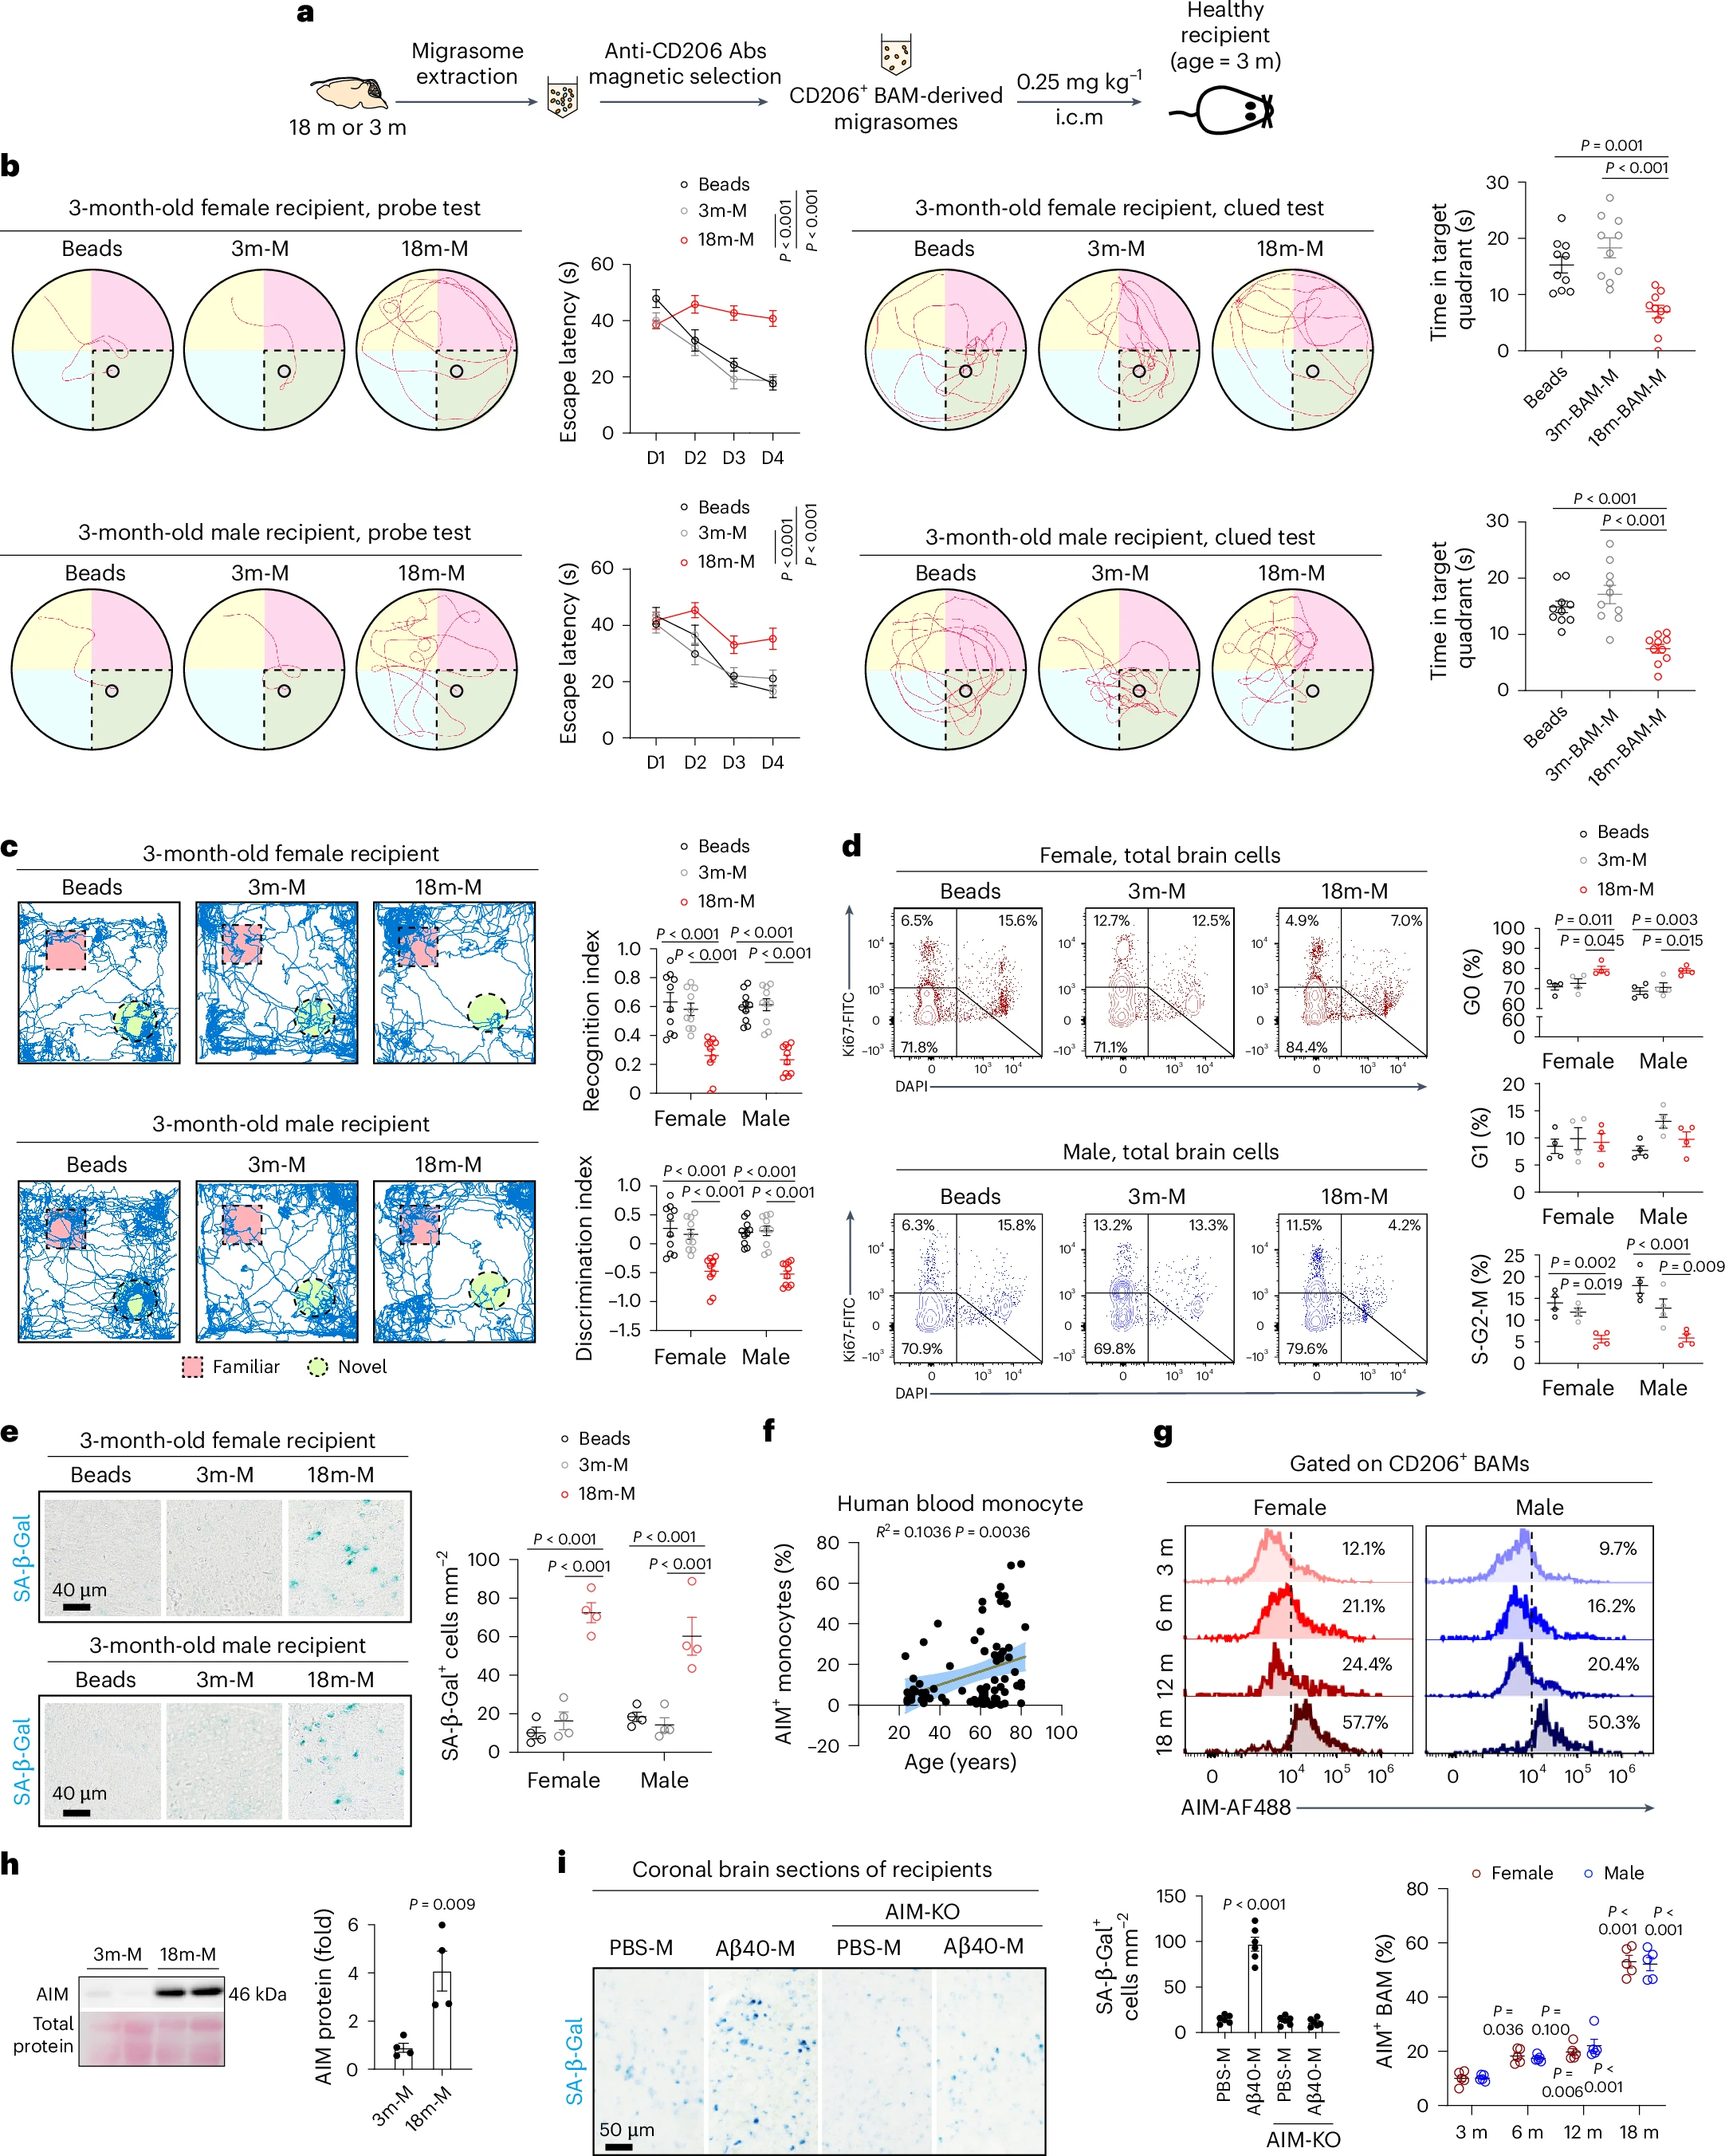
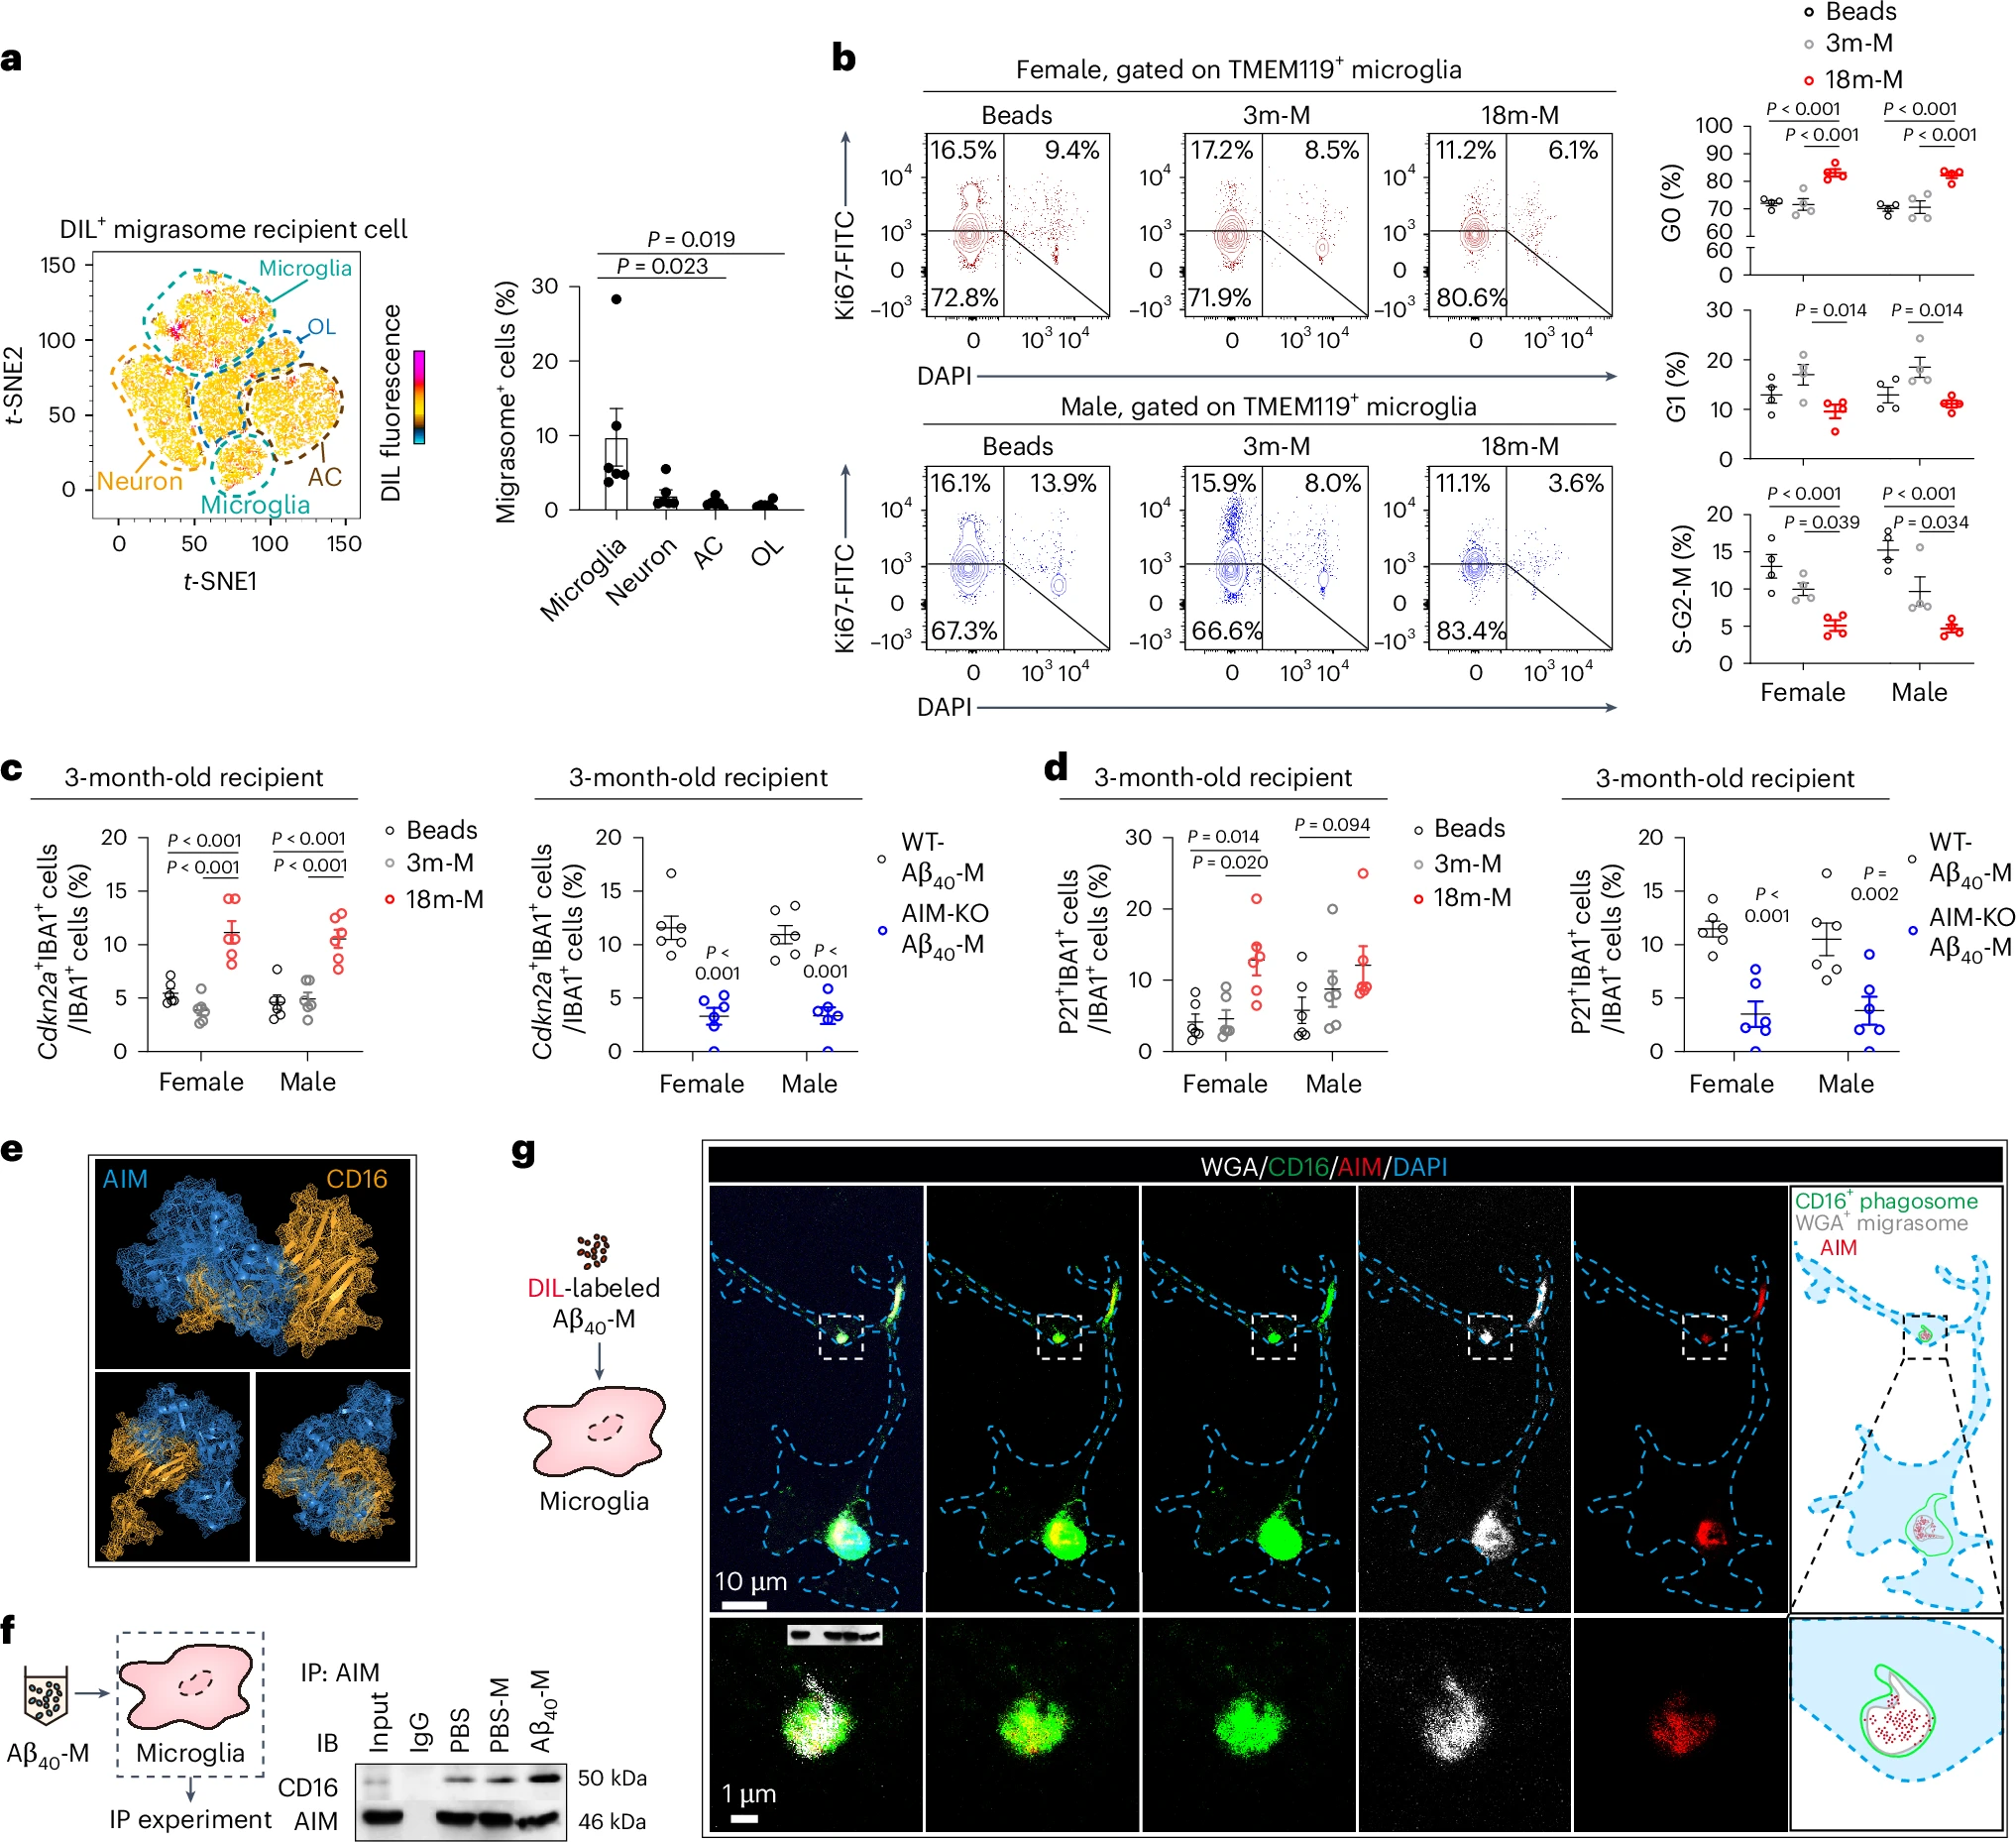
从18月龄(18m-M)和3月龄(3m-M)的雄性小鼠体内通过梯度离心分离脑内迁移体,筛选出CD206⁺ BAMs来源的迁移体,并通过大脑导水管注入健康3月龄雌性或雄性小鼠体内(Fig.4a)(注:另有一组空白对照组排除了注射操作和磁珠残留本身的干扰)。荧光显微镜观察结果显示:两组迁移体都能扩散到脑实质中,借此可以排除上述的第二种猜想。此外,通过莫里斯水迷宫实验(Fig.4b)和新物体识别测试(Fig.4c),发现18m-M的转移会导致受体的认知能力下降;且18m-M的转移会导致受体脑细胞出现细胞周期停滞(Fig.4d)、SA-β-Gal的表达水平增加(Fig.4e)。体外实验中,使用18月龄雄性供体的迁移体处理时,OSC细胞也出现了细胞周期停滞的现象。上述现象进一步提示衰老BAMs产生的迁移体与细胞的衰老存在关联。
那么,是衰老BAMs所产生的迁移体中的特殊成分将衰老信息传递给脑细胞吗?既往研究提示:①脑脊液和外周血液中AIM(即CD5L)水平随年龄增长而上升,且与多种与衰老相关疾病有所关联;②此前发现AIM是Aβ₄₀诱导巨噬细胞产生的迁移体中所含的主要成分。那么,AIM在此处是否与18m-M的促衰老作用有关?研究团队发现:人外周血单核细胞(Fig.4f)和小鼠BAMs(Fig.4g)的AIM表达水平随年龄增长而升高;18m-M与Aβ刺激BMDMs(Aβ₄₀-M)所产生的迁移体类似,内含大量AIM(Fig.4h);且直接予AIM处理同样会促使脑OSCs发生衰老的现象。这提示AIM本身即可以引发细胞衰老,可能是研究团队所寻找的“特殊成分”。
为了进一步验证这一作用,研究团队在体外敲除了巨噬细胞的Cd5l基因,予Aβ₄₀刺激以诱发细胞衰老,随后分离其产生的迁移体并转移至年轻的雄性受体中。研究团队发现,处理后未敲除AIM的受体脑中SA-β-Gal的表达水平有所上调,而敲除AIM的受体则没有这种效应(Fig.4i)。上述研究结果表明,类衰老巨噬细胞产生的迁移体可以促进细胞衰老,而AIM是这些衰老相关迁移体(senescence-associated migrasomes, SAMs)中促衰老的关键信号分子。
SAMs中的AIM通过CD16及其下游信号通路促使小胶质细胞发生衰老
在上述研究的基础上,研究团队进一步提出新的问题:SAMs中的AIM是主要促进哪些细胞衰老?它通过什么样的机制促进细胞衰老的?
研究团队首先确认了SAMs的受体细胞。使用膜染色剂DIL对野生型RAW264.7巨噬细胞迁移体进行标记,并将其注射至健康年轻雄性小鼠体内。流式细胞术分析提示各种脑细胞均能与这些迁移体相结合,其中小胶质细胞的结合程度最高(Fig.5a)。研究团队对这些小胶质细胞进行了进一步的检测,发现与接受3m-M或PBS处理的小鼠相比,18m-M处理的小胶质细胞的细胞周期明显缩短(Fig.5b)、Cdkn2a的转录水平更高(Fig.5c)、衰老相关标记物(p21)表达上调及多种细胞衰老相关的标志物(警报蛋白HMGB1活化、DNA损伤标志物p-γH2AX表达、染色质结构异常、促分泌表型p-STAT3表达、代谢物变化、氧化损伤、溶酶体结构损伤等)。此外,经Aβ₄₀-M处理的小胶质细胞的Cdkn2a和p21的表达亦呈现出相似的改变。体外实验中,Aβ₄₀-M能诱导小胶质细胞发生衰老现象,表现为细胞周期停滞、脂褐素积累、SA-β-Gal表达上调、端粒缩短、衰老相关标志物表达上调、SASP生成增加。而Aβ₄₀刺激后产生的可溶性物质、外泌体等其他产物则不会导致小胶质细胞出现这种现象。上述现象表明:小胶质细胞是SAMs的主要受体细胞。
既然小胶质细胞经SAMs处理后可获得衰老相关特性,其吞噬功能是否会受影响?研究团队行Bulk RNA-seq示:经Aβ处理的小胶质细胞中,吞噬相关基因表达(Lrp1、Cd14、Lrp8、Cd44等)下调;基因富集分析亦发现其代谢功能受抑,而炎症相关通路则有所上调。此外,经SAMs处理的小鼠同18月龄一样,对Aβ和髓鞘蛋白(MBP)的吞噬能力均出现了下降,而TNF的表达则出现了上调。上述结果表明:SAMs会损害小胶质细胞的吞噬功能。
前述研究发现,AIM是SAMs中促衰老的关键信号分子,而SAMs则可以使小胶质细胞获得衰老相关特性并削弱其吞噬能力,那么新的问题自然而然地产生了——SAMs是否通过AIM介导小胶质细胞衰老及吞噬功能下降?其具体机制是什么样的?研究团队通过体外实验发现:①单独使用AIM即可导致小胶质细胞脂褐素积累,而敲除AIM的巨噬细胞无论在体外还是体内(Fig.5c-d)均不会出现小胶质细胞的衰老。上述结果表明,AIM是SAMs中诱导细胞衰老的主要物质。
使用HitPredict数据库分析显示有18种蛋白质可能与AIM发生相互作用,而RNA测序发现其中有6种蛋白质在Aβ₄₀-M处理的小胶质细胞中表达上调,以CD16最为显著。分子对接分析也提示CD16是AIM的潜在受体之一(Fig.5e)。体内方面,与4月龄小鼠相比,10月龄小鼠小胶质细胞中CD16编码基因Fcgr3转录上调,这与前述结果相符。体外方面,Aβ₄₀-M处理也能使OSCs及原代小胶质细胞CD16的表达也出现了上调。进而,研究团队将Aβ₄₀-M添加至富含小胶质细胞的培养体系中,培育24小时后,免疫沉淀分析提示AIM和CD16存在物理上的相互作用(Fig.5f)。免疫荧光染色提示:迁移小体中的AIM首先被靶细胞吞噬,随后从迁移小体释放并进入吞噬体,与CD16发生相互作用。利用抗体阻断CD16后,Aβ₄₀-M所引发的细胞衰老效应也被完全消除。上述研究结果提示,SAMs中的AIM主要通过激活CD16及其下游信号介导细胞衰老。
此外补充:尽管CD36也是AIM受体之一,但阻断CD36并不能逆转Aβ₄₀-M导致小胶质细胞衰老。这说明CD36并未参与这一过程。
研究团队亦分析了CD16的下游信号通路。团队发现,Aβ₄₀-M可激活NF-κB、ERK、p38、JNK等因子,而后者都参与了细胞衰老的过程。而敲除AIM或阻断CD16活性,则可逆转上述因子的激活。综上所述,迁移体中的AIM可通过CD16及相关的信号通路介导小胶质细胞的衰老过程。
此外,值得注意的是:
- 经过Aβ₄₀-M处理的小胶质细胞中,AIM编码基因
Cd5l的转录水平有所上调; - 18m-M及Aβ₄₀-M受体脑内的非小胶质细胞(IBA1⁻,如神经元、其他胶质细胞)中也出现p21和
Cdkn2a的表达。
这表明衰老的小胶质细胞本身也有可能化身为新的“传染源”,将AIM等衰老信号传递给神经元和其他细胞,提示了可能存在BAMs→小胶质细胞→全脑细胞的级联放大衰老机制。
抑制BAMs产生的迁移体可延缓大脑衰老
既然BAMs在衰老早期即可获得衰老相关特性,其产生的迁移体可将衰老信号传递给小胶质细胞等脑细胞,从而引起全脑的衰老,那么我们是否可以通过靶向这一过程来延缓大脑的衰老?
既往研究发现TSPAN4对维持迁移体的稳定至关重要。迁移体的形成分两阶段:首先,膜张力使得迁移后留下的收缩纤维出现局部膨大;然后TSPAN4被招募至膨大处并使其稳定,最终形成成熟迁移体,这为研究团队提供了思路。将携带靶向TSPAN4的siRNA的脂质体注射至18月龄雌雄小鼠的脑脊液中以特异性降低BAMs的TSPAN4表达水平,随后对脑内囊泡分析,结果显示BAMs来源的CD206⁺TSPAN4⁺迁移体比例有所下降。
那么这种下降能否改善衰老的情况?能。研究团队发现,处理后的小鼠的认知功能(莫里斯水迷宫实验,Fig.6a和新物体识别测试,Fig.6b)有所改善;流式细胞术示小胶质细胞乃至全脑细胞的细胞周期停止现象有所改善(Fig.6c-d)。同时,小胶质细胞的Cdkn2a基因转录水平下调、SASP如TNF、IFN-γ的生成也有所减少,说明抑制BAMs的迁移体形成可以减缓小胶质细胞的衰老现象。
团队进一步检测了小胶质细胞对Aβ蛋白及髓鞘蛋白的清除能力,结果发现:小胶质细胞的吞噬活性得到了增强,白质结构更为完整(Fig.6e)、海马区神经元活性提高(Fig.6f)。上述结果说明:抑制BAMs产生的迁移体可以延缓大脑衰老并改善神经功能,有望成为抗衰老治疗的潜在靶点。

总结与结论
由类衰老状态的边界相关巨噬细胞(BAMs)在大脑衰老早期即表现出衰老相关特性,这些细胞衰老后产生的迁移体增多,后者所携带的AIM能激活以小胶质细胞为主的受体细胞中的CD16和下游信号通路,继而促使细胞衰老。而靶向迁移体产生的治疗有望成为抗衰老治疗的全新靶点。
研究局限性
在Discussion部分,作者提出了实验存在的一些局限性(解读来自AI):
缺少“敲除AIM+Aβ₄₀刺激”的体内交叉实验;
解读:AIM-KO × Aβ40 的体内实验,牵一发动全身。 补这个实验看似只是“再来一组小鼠”,实际上 AIM-KO 小鼠本身有自发免疫异常和肾脏病变的背景,衰老过程中这些继发病理会严重干扰脑衰老表型的解读。
BAMs来源的迁移体穿过脑膜、进入脑实质机制尚不明确。
解读: 要直接观察囊泡在活体脑膜与实质之间的迁移,需要以脑膜为目标的活体双光子成像 + 不改变囊泡性质的荧光标记,这套技术目前全球只有极少数实验室在做(主要用来看脑膜免疫细胞),看亚微米级囊泡的实时扩散几乎没有先例。这不是“多花半年”的问题,是方法学前沿还没铺到这里。作者只能用“迁移体装载蛋白酶”这个间接推测占位。
Nahida
也许是各种学习小记的集合。
正在播放1 / 2